领域前沿·中国
套索RNA的代谢和功能研究进展
唐祺 郑丙莲*
(复旦大学生命科学学院, 复杂性状的遗传调控全国重点实验室, 上海 200438)
| 郑丙莲, 复旦大学生命科学学院教授、博士生导师、青年科学基金项目(A类)获得者。主要研究领域为植物非编码RNA与表观遗传, 聚焦探索不同种类非编码RNA,尤其是套索RNA, 如何产生、如何发挥作用以及在植物生殖发育过程中发挥何种作用。近期相关成果主要发表在Science、Mol Cell、Dev Cell、Plant Cell、PNAS、NAR等学术期刊, 引领了国际套索RNA代谢和功能研究的新方向。 |
套索RNA的代谢和功能研究进展
唐祺 郑丙莲*
(复旦大学生命科学学院, 复杂性状的遗传调控全国重点实验室, 上海 200438)
【摘要】套索RNA(lariat RNAs)是前体信使RNA(pre-mRNA)剪接过程中被切除的内含子所形成的固有产物。长期以来, 套索RNA被视为无功能的剪接副产物, 并由胞内唯一的去分支酶DBR1特异性识别并水解其2’-5’磷酸二酯键, 进而被外切酶快速降解。DBR1的功能完全缺失导致套索RNA全局性累积, 并引发动植物胚胎致死。最新研究表明, 动植物中部分套索RNA可逃逸DBR1去分支所介导的降解, 进而在细胞内稳定积累, 参与众多生理与病理学过程。该文系统梳理了DBR1的结构特征、底物识别特异性及互作蛋白调控机制, 总结了套索RNA在全基因组水平上鉴定的前沿技术; 重点阐述了套索RNA在转录后调控中的多维生物学功能, 包括作为非编码RNA(ncRNA)前体、顺式激活宿主基因转录、维持剪接体循环与剪接保真性, 以及作为分子海绵或支架调控结合蛋白与小RNA的稳态。基于“动力学竞争模型”, 深入探讨了DBR1去分支与套索RNA核质运输对细胞稳态及病理过程(如神经退行性疾病、病毒致病与应激响应)的调控机制。作为经典的管家型ncRNA之一, 解析套索RNA的代谢与功能调控不仅有助于加深对基因表达可塑性的认识, 也可为深入理解套索RNA作为非编码RNA的通用生物学特性及开发潜在RNA药物靶点提供新视角。
【关键词】套索RNA; DBR1; 去分支; RNA剪接; 非编码RNA
Advances in Metabolism and Function of Lariat RNAs
TANG Qi, ZHENG Binglian*
(National Key Laboratory of Genetic Regulation of Complex Traits, School of Life Sciences, Fudan University, Shanghai 200438, China)
【Abstract】Lariat RNAs are intrinsic products derived from excised introns during pre‑mRNA splicing. For a long time, lariat RNAs were considered as non‑functional splicing by‑products. They are specifically recognized by DBR1, the sole cellular debranching enzyme, which hydrolyzes their 2’‑5’ phosphodiester linkage, followed by rapid degradation by exonucleases. Complete loss‑of‑function of DBR1 results in global accumulation of lariat RNAs and embryonic lethality in both animals and plants. Cumulative evidence indicates that a subset of lariat RNAs in animals and plants can escape DBR1‑dependent debranching and degradation, stably accumulating in cells and participating in diverse physiological and pathological processes. This review systematically summarizes the structural features, substrate‑recognition specificity of DBR1 and regulatory modes mediated by its interacting proteins, and outlines state‑of‑the‑art techniques for genome‑wide identification of lariat RNAs. Multiple biological roles of lariat RNAs in post-transcriptional regulation are highlighted: serving as precursors for ncRNAs (non‑coding RNAs), cis‑activating host gene transcription, sustaining spliceosome recycling and splicing fidelity, and acting as molecular sponges or scaffolds to modulate the homeostasis of binding proteins and small RNAs. Based on the “kinetic competition model”, DBR1-catalyzed debranching and nucleocytoplasmic trafficking of lariat RNAs are further discussed with respect to their co-modulation of cellular homeostasis and pathological processes, including neurodegenerative disorders, viral pathogenesis and stress responses. As a class of housekeeping‑like ncRNAs, deciphering the metabolism and functional regulation of lariat RNAs helps deepen understanding of gene‑expression plasticity, and provides new perspectives for comprehending general biological properties of lariat‑derived ncRNAs and exploring potential RNA‑based therapeutic targets.
【Keywords】lariat RNAs; DBR1; debranching; RNA splicing; non-coding RNA
在真核生物中, 基因表达的准确调控依赖于前体信使RNA(pre-mRNA)精准且高度偶联的加工过程。真核生物基因普遍具有“断裂基因”(split gene)的结构特征, 其编码序列(外显子)被非编码序列(内含子)分隔[1-2]。在pre-mRNA剪接过程中, 内含子被切除并以特异的2’-5’磷酸二酯键分支结构形式释放, 生成套索RNA(lariat RNAs)[3]。由于绝大多数真核生物基因均含有内含子, 套索RNA在胞内的生成量与成熟mRNA呈摩尔等量分布, 且展现出极高的序列与拓扑结构多样性。因此, 套索RNA的代谢是真核细胞内数量最为庞大RNA质量监控(RNA quality control, RQC)的对象之一。
长期以来, 套索RNA被普遍视为剪接反应后无功能的废弃副产物。在正常的生理稳态下, 其代谢过程完全依赖于真核生物中唯一的RNA去分支酶1(RNA debranching enzyme 1, DBR1)[4]。DBR1能够特异性识别并水解套索RNA分支位点的2’-5’磷酸二酯键, 将套索转化为线性内含子, 随后被外切酶快速降解。DBR1功能的完全缺失会导致套索RNA的全局性累积, 且导致动植物胚胎致死, 提示套索RNA的正常降解直接与生物的存活相关。然而, 近年来随着高通量测序技术的革新以及生物信息学算法的发展, 这一经典范式迎来了重大突破: 从植物到哺乳动物, 大量研究表明相当一部分套索RNA能够逃逸DBR1介导的去分支降解, 在胞内特异且稳定地积累。稳定存在的套索RNA不仅可作为非编码RNA(non-coding RNA, ncRNA)前体, 还能通过顺式调控宿主基因转录、维护剪接体循环, 以及作为“分子海绵”或“分子支架”调控蛋白与小RNA稳态, 在发育演化、应激响应及神经退行性疾病等病理生理过程中展现出多维的调控功能[5]。
作为管家型非编码RNA的经典原型, 深入解析套索RNA的代谢与功能调控机制, 不仅能极大拓宽我们对非编码RNA的认知, 更可为进一步对真核生物基因表达的可塑性提供新的视角。本文将围绕套索RNA的代谢调控及其生物学功能展开系统综述: 首先梳理套索RNA的生成与DBR1的生化结构特征及其互作蛋白; 其次总结套索RNA全基因组高通量鉴定与体外合成的前沿技术; 再次重点剖析稳定套索RNA在转录及转录后水平的多维功能机制;最后基于“动力学竞争模型”, 探讨DBR1介导的套索RNA去分支与套索RNA核质运输对细胞稳态的动态调控, 并展望该领域面临的未解难题与潜在治疗应用。
1 套索RNA的生成
在最早对真核生物基因表达的研究中发现了一个谜题: 细胞核内转录本的分子量显著高于细胞质中的成熟mRNA, 断裂基因的发现提供了这一谜题的答案。1977年Sir Richard John Roberts团队[1]和Phillip Allen Sharp团队[2]发现成熟mRNA与其DNA模板杂交时可形成特殊的R-loop结构。该结构呈典型的三链核酸构型, 由成熟mRNA与同源DNA配对形成的DNA/RNA杂合双链以及一条游离的单链DNA构成。
后续研究发现, 绝大多数真核生物结构基因属于断裂基因, 由外显子(expressed region, exon)和内含子(intervening sequence, intron)交替镶嵌组成。不过少数蛋白编码结构基因, 以及部分tRNA、rRNA编码基因不属于此类。断裂基因转录生成pre-mRNA, 需借助剪接反应去除内含子转录片段、连接外显子转录序列, 使编码序列连续化。剪接过程参与基因表达调控: 单一mRNA前体可选择不同剪接位点发生可变剪接(alternative splicing, AS), 产生多种mRNA变体, 进而翻译得到蛋白质同源异构体[6]。
内含子根据其剪接方式差异可被分为I型内含子[7]、II型内含子[8]以及剪接体(III型)内含子[9]。根据结构与剪接方式的差异, 真核生物内含子可被分为不同类型, 各类内含子的分布特征与剪接机制存在显著区别。Ⅰ型内含子主要分布于真核生物线粒体、质体、低等真核生物核rRNA基因, 同时少量存在于细菌与噬菌体的部分基因中; Ⅱ型内含子多定位于真菌线粒体及植物叶绿体的基因序列中。Ⅰ型与Ⅱ型内含子均属于自我剪接型内含子, 无需大量复杂的蛋白酶、剪接因子等辅助元件参与, 主要依靠自身特殊的序列与二级结构, 即可自主切除内含子序列、连接相邻外显子, 完成成熟RNA的加工成熟。
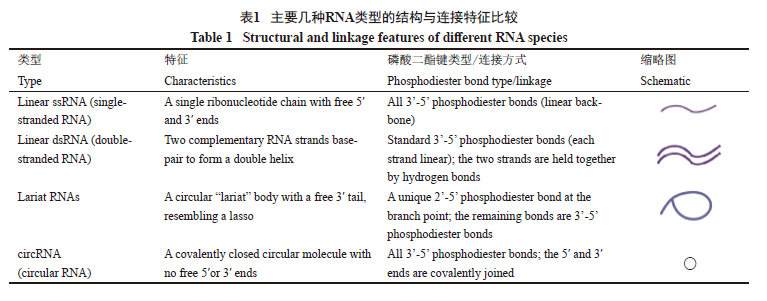
剪接体内含子为真核生物细胞核pre-mRNA的内含子类型, 与前两类内含子不同的是, 该类内含子无法自主形成稳定有序的二级结构, 剪接过程必须依赖剪接体的催化辅助才能完成。剪接体是一种动态大分子复合物, 核心组成元件为U1、U2、U4、U5、U6五种小核核糖核蛋白颗粒(small nuclear ribonucleoprotein particle, snRNP), 每种snRNP均由特异性蛋白与富含尿苷酸的小分子核RNA(snRNA)组装而成, 是介导核内pre-mRNA精准剪接的核心功能结构。剪接体介导的pre-mRNA剪接过程高度有序,全程包含两步连续的酯基转移反应, 依次完成分支反应与外显子连接反应。首先, U1 snRNP识别5′剪接位点(5′ splicing site, 5′SS), 剪接因子SF1结合内含子分支位点(branch point, BP), 同时U2辅助因子(U2 snRNP auxiliary factor, U2AF)识别多聚嘧啶区与3′剪接位点(3′ splicing site, 3′SS), 共同形成早期复合物(E complex)。随后, U2 snRNP结合BP并进一步招募U4/U6-U5三联snRNP, 经构象重排后组装成具备催化活性的成熟剪接体。在催化阶段: 第一步反应中, 位于BP位点核苷酸的2′OH亲核攻击5′SS的磷酸二酯键, 形成2’-5’磷酸二酯键并产生套索状结构; 第二步反应中, 释放出的上游外显子3′OH进攻下游3′SS的磷酸二酯键, 将上下游外显子拼接连接, 形成成熟的mRNA, 并将内含子套索RNA(lariat RNAs)释放出来(图1和表1)[10]。
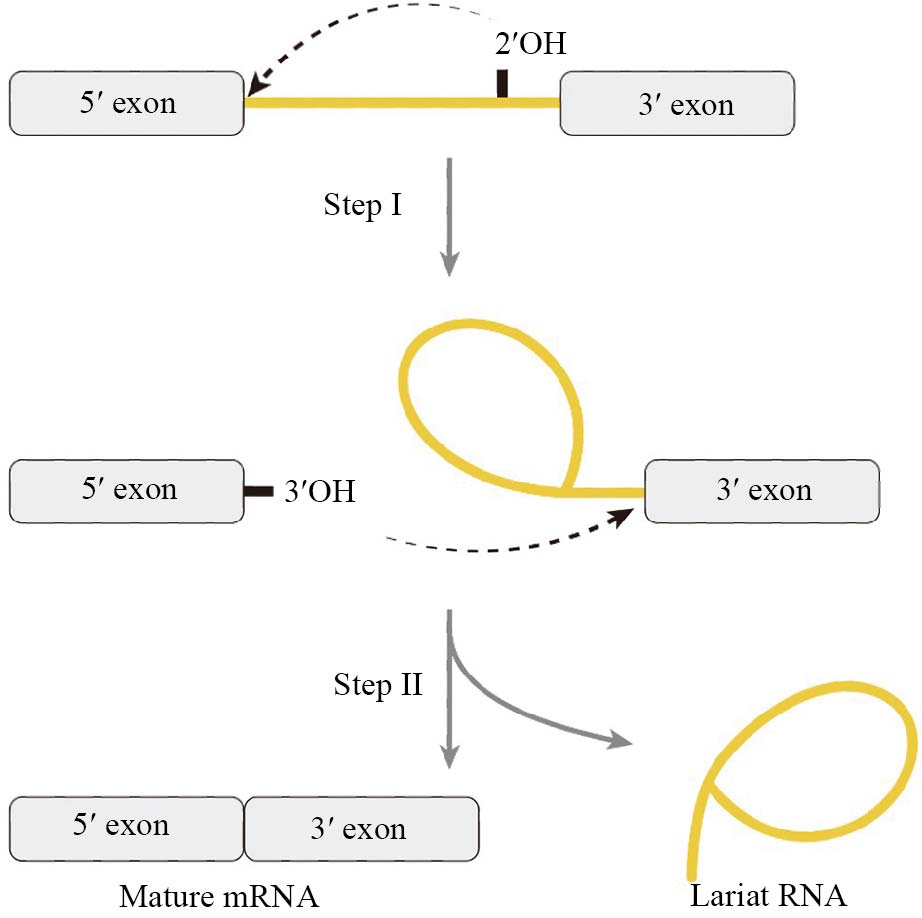
Pre-mRNA经两步连续转酯反应被剪接为成熟mRNA, 同时产生含有2’-5’磷酸二酯键的内含子套索RNA。
Pre-mRNA undergoes splicing into mature mRNA via two consecutive transesterification reactions, concomitantly releasing intron lariat RNAs containing a 2’-5’ phosphodiester bond.
图1 内含子套索RNA的生成过程(根据参考文献[10]改编)
Fig.1 The biogenesis of intron lariat RNAs (adapted from the reference [10])
2 DBR1介导套索RNA去分支线性化的功能与机制
2.1 DBR1是介导套索RNA去分支线性化的关键酶
套索RNA于1984年被发现为pre-mRNA剪接的副产物, 而唯一负责套索RNA去分支的DBR1酶随后才得到分离鉴定[4]。1991年, 研究者利用芽殖酵母(Saccharomyces cerevisiae)进行遗传筛选, 寻找调控类逆转录转座子Ty1、Ty3转座的作用元件, DBR1基因在该研究中首次被鉴定[4]。实验表明, 多个芽殖酵母dbr1等位基因突变体的Ty1和Ty3元件转座效率相较野生型均显著下降。后续研究证实, 该蛋白在进化上的功能保守性使其同样能够促进人类逆转录病毒HIV-1的复制[11-12]。尽管DBR1参与转座子(transposable element, TE)转座和HIV-1复制的机制仍不清楚, 但这些发现明确了DBR1是调控逆转录元件活性的关键因子之一。此外, 由于芽殖酵母基因组中内含子区域占比极小, DBR1的功能对其生长发育并非必需; 然而, 在内含子序列占比约20%的裂殖酵母(Schizosaccharomyces pombe)中, dbr1纯合无义突变体则表现出严重的生长发育缺陷的表型[13]。
此外, 在拟南芥和小鼠中, dbr1纯合无义突变均表现出胚胎致死表型[14-15]。同时, 利用CRISPRCas9基因编辑技术在人类细胞中构建的dbr1无义或移码突变细胞株系, 也表现出显著的生长与存活缺陷表型[16]。临床研究表明, DBR1功能损伤也会引发一种常染色体隐性遗传性先天性免疫缺陷病(临床表现为儿童脑干病毒性脑炎和致死性先天性鱼鳞病)[17-18]。尽管DBR1功能缺失导致不同物种表现出异常表型的具体机制尚未完全明确, 但目前有假说认为这与其基因组中含内含子基因的占比密切相关: 芽殖酵母中仅约2.5%的基因含有内含子, 而裂殖酵母中该比例升至约20%; 相比之下, 植物、小鼠及人类等高等真核生物中超过70%的基因含有内含子。DBR1蛋白在真核生物中广泛存在, 其介导套索RNA去分支的功能在物种间高度保守—拟南芥、小鼠或人类的DBR1均能完全恢复裂殖酵母dbr1突变体的表型[14,18-20]。
动植物中DBR1功能缺失突变会引发胚胎致死,因此难以获得DBR1纯合敲除突变体, 这限制了在体内层面研究DBR1调控套索RNA代谢的分子机制。故而早期DBR1介导套索RNA去分支功能研究主要依赖酵母等低等生物dbr1突变体与体外酶活实验。Northern blot与套索RNA测序结果显示, 部分内含子产生的套索RNA在dbr1突变体中显著累积; 体外酶活实验则利用人工合成带有2’-5’磷酸二酯键的Y形RNA底物, 检测DBR1的去分支催化活性[21-24]。
随着相关研究的逐步深入, DBR1在高等真核生物中介导套索RNA去分支反应的遗传学证据不断丰富。在拟南芥甲基磺酸乙酯(ethyl methanesulfonate, EMS)诱变筛选miRNA生成或功能异常突变体的过程中, 获得一株单个碱基突变但具有多效性发育缺陷的dbr1-2弱突变体。该突变体表现出叶缘缺刻、叶片丛生、植株矮化及结实率降低等多种发育异常表型[25]。相较于野生型植株, dbr1-2突变体内约10%的套索RNA发生显著累积[26-27]。近期, Fairbrother实验室[16]成功构建了可正常存活的dbr1缺陷型HEK-293T细胞系, 并在全基因组水平层面证实,DBR1功能部分缺失即可导致细胞内大量套索RNA累积。虽然目前DBR1从调控逆转录转座子转座到介导套索RNA去分支的功能演化机制尚不充分清楚, 但现有研究也表明, DBR1作为调控真核生物套索RNA代谢的关键组分, 对高等真核生物的正常生命活动与生存发育至关重要。
2.2 DBR1介导套索RNA去分支线性化的生化结构特征
DBR1蛋白识别底物具备严格的结构特异性。体外去分支酶活实验证实, 该酶仅特异性水解套索RNA分支位点处的2’-5’磷酸二酯键, 且催化活性依赖相邻2’-5’与3’-5’磷酸二酯键共同存在。这种双化学键依赖特征说明, 分支RNA独特的空间结构是DBR1实现底物识别的核心元件。此外, 当分支位点碱基为腺苷(A)时, DBR1催化效率显著高于鸟苷(G)、尿苷(U)与胞苷(C)[28], 提示酶活性中心可与腺嘌呤碱基发生特异性相互作用。DBR1蛋白是由N-端金属磷酸酯酶结构域(metallophosphoesterase, MPE)与C-端结构域(C-terminal domain, CTD)构成(图2A)。N-端MPE结构域在跨物种演化中高度保守,与其水解磷酸二酯键的核心催化功能相匹配。与之相反, C-端序列在不同物种间则分化各异, 提示了该区域可能具备功能异质性。可变的C-端区域在一些物种中含有典型核定位信号(nuclear localization signal, NLS), 调控蛋白亚细胞分布; 人源、真菌与植物DBR1能够发生主动核质穿梭[25,29-30], 而阿米巴原虫(Entamoeba histolytica) DBR1(EhDBR1)主要定位于细胞质[31]。上述物种特异性的亚细胞定位特征表明, C-端除支撑核心催化功能外, 还兼具调控功能。
MPE家族蛋白依靠高度保守的GNHD/E基序结合双金属离子, 组装形成催化中心并发挥酶活性。结构生物学研究显示, DBR1与分支RNA底物之间通过多重分子作用力实现相互识别(图2B)。分支RNA-EhDBR1复合物结构模型表明, His91的空间构象适配2’-5’磷酸二酯键的水解去分支反应; 丙氨酸替换突变实验证实该残基是维持DBR1体内外催化活性的关键位点[21,23-24,32-35]。DBR1的催化残基群(Lys59/Tyr64/Asp205/Met231)可通过空间约束效应,将RNA分支位点锚定在双核MPE活性中心。紧邻催化中心的套索识别环区域(lariat recognition loop,LRL; 130–158位氨基酸)构成不依赖碱基序列的识别模块: Lys134与底物3′侧旁胞苷形成氢键, Phe136与His156借助碱基堆积作用以及核酸骨架相互作用稳定3′端腺苷。其核心催化机制为: 2’-鸟苷与3’-胞苷之间的碱基堆积诱导核酸骨架发生构象形变, 推动分支位点腺苷翻转并嵌入Tyr64与His156形成的π-π堆积夹层结构。RNA分支区域的骨架构象重塑,与MPE结构域静电表面形成互补, 使DBR1既能区分线性仅有3’-5’磷酸二酯键的RNA, 又可识别序列多样的分支位点[33]。突变实验表明, 破坏上述关键结构元件(如LRL缺失、Cys14定点替换)可完全消除DBR1的体内去分支活性, 说明这些元件协同参与底物识别过程。
所有MPE家族酶均依赖双金属离子作为辅因子[33], 而DBR1拥有独特的双锰离子(di-Mn2⁺)活性中心[32,34]。相较于家族其他成员, DBR1存在一处特征性差异: 保守半胱氨酸(Cys)残基取代了其他MPE蛋白该位置普遍存在的天冬氨酸(Asp)。该替换能够形成稳定的Zn2+-Cys配位键, 保护邻近Fe2⁺辅因子不被氧化[21,32,36]。EhDbr1晶体结构与酿酒酵母ScDbr1生化实验结果共同证明, Mn2+、Fe2+、Zn2+三类金属离子协同调控DBR1催化套索RNA去分支的酶活过程[33]。
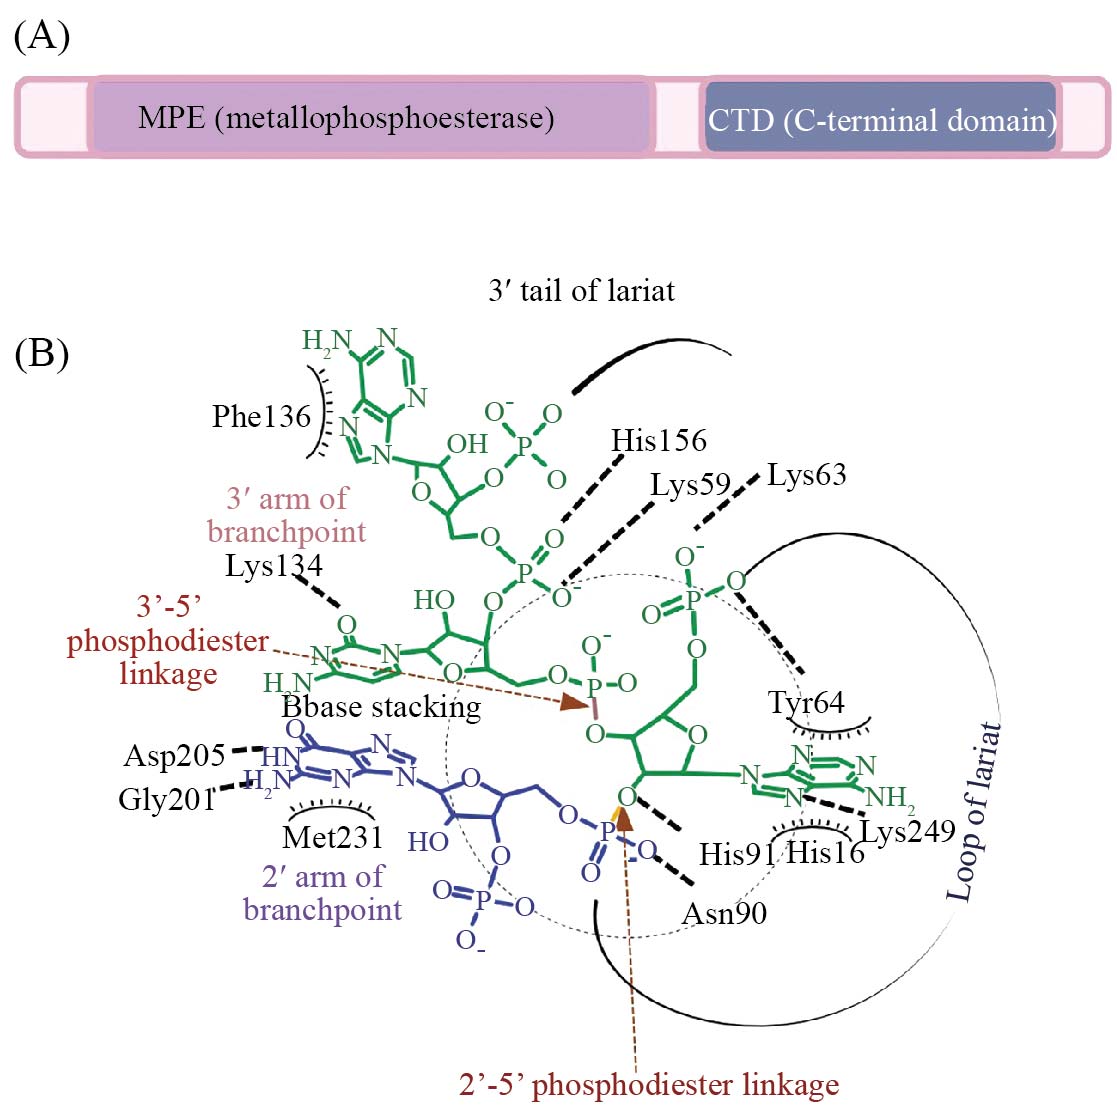
A: DBR1蛋白的结构域分布示意图; MPE: 金属磷酸酯酶结构域; CTD: C-端结构域; B: EhDBR1关键氨基酸残基与分支RNA分支位点的相互作用示意图。保守残基通过多重分子间作用力锚定分支RNA骨架, 从而实现对其2’-5’磷酸二酯键的特异性识别与线性化。
A: schematic domain organization of DBR1 protein; MPE: metallophosphoesterase; CTD: C-terminal domain; B: schematic representation of interactions between key amino acid residues of EhDBR1 and the lariat RNA branchpoint. Conserved residues anchor the lariat RNA backbone through multiple intermolecular forces, thereby enabling specific recognition and linearization of its 2’-5’ phosphodiester bond.
图2 阿米巴原虫DBR1的生化结构特征(根据参考文献[23-24]改编)
Fig.2 Biochemical and structural features of EhDBR1 (adapted from references [23-24])
2.3 DBR1互作蛋白的研究进展
尽管现有研究已证实DBR1负责介导套索RNA的去分支反应, 但DBR1在细胞内如何被招募并结合套索RNA的分子机制仍然需要进一步研究。已有研究显示, DExD/H-box家族两种RNA解旋酶Prp22与Prp43分别参与成熟mRNA和套索RNA的释放过程[37-38]。Prp43依靠RNA依赖性ATP酶活性, 在剪接反应完成后催化剪接体解离, 介导套索RNA释放[39-42]。在酵母体系中, 过表达ATP酶功能缺陷突变体Prp43 T123A可产生显性负效应, 抑制细胞生长。该突变不干扰剪接催化与成熟mRNA从剪接体释放, 但能够显著阻断内含子套索RNA释放。当套索RNA滞留在Prp43 T123A阻滞的剪接复合物中时, DBR1无法接触其底物, 因而无法催化套索RNA去分支[43]。上述证据也表明, Prp43介导的套索RNA的释放是DBR1发挥对套索RNA去分支功能的必要前提。
DBR1能够特异性识别分支RNA结构并催化去分支反应, 是调控套索RNA代谢的核心酶[24]。推测DBR1功能实现需要其他RNA结合蛋白(RNA binding protein, RBP)协同参与, 以此调控底物识别特异性或催化效率。近期研究发现, 结合分支位点附近的RNA结合蛋白AQR可介导DBR1招募至内含子结合复合体(intron-binding complex, IBC); AQR功能缺失突变体同样表现出与DBR1敲除细胞株系中套索RNA大量累积相似的表型。针对DBR1互作蛋白的筛选工作进一步鉴定出同源非催化蛋白DRN1, 该蛋白可与DBR1结合, 并在酵母与人类细胞中参与套索RNA代谢调控。然而DRN1敲低或敲除仅造成体内套索RNA轻微累积, 说明其对套索RNA代谢的调控作用相对有限[44-45]。拟南芥中的后续研究表明, 富含脯氨酸的SIC(SICKLE)蛋白可直接与DBR1互作, 促进套索RNA代谢。高温胁迫诱导SIC发生液–液相分离, 将DBR1招募至应激颗粒(stress granule); DBR1亚细胞定位改变导致套索RNA内源累积, 并通过顺式调控上调耐热相关基因转录, 最终提升植株耐热性[46]。与此同时, 人类细胞研究发现SIC的人源同源蛋白TTDN1(trichothiodystrophy non-photosensitive 1)同样能够结合DBR1。TTDN1通过MPLKIP结构域直接结合DBR1, 其N-端内在无序区域则负责与内含子结合复合体IBC互作[47-48]。敲除SIC或TTDN1均可产生与dbr1突变体类似的套索RNA累积表型,证明二者均能协助DBR1完成对套索RNA的去分支降解过程。进一步生化实验显示, DBR1能够维持TTDN1蛋白稳定性; 而TTDN1在不改变DBR1底物特异性的前提下, 可将DBR1催化效率提升19倍[47]。
植物中近期的一项研究发现ALBA(acetylation lowers binding affinity)家族蛋白可与DBR1相互作用。一方面, ALBA蛋白通过C-端的精氨酸–甘氨酸富集基序(arginine-glycine-glycine/arginine-glycine rich sequence, RGG/RG-rich motif)结合套索RNA, 增强DBR1与底物的结合能力; 另一方面依靠N-端结构域结合并激活DBR1, 提升其去分支酶活, 加速套索RNA降解。低温胁迫能够减弱ALBA与DBR1的相互作用, 从而引发套索RNA的累积, 进而抑制冷响应基因转录[49]。这一系列DBR1互作蛋白的鉴定研究充分说明DBR1介导的套索RNA去分支过程需要辅因子的参与, 进而维持套索RNA代谢的高效降解。
3 套索RNA的鉴定研究进展
3.1 传统方法鉴定单个位点套索RNA
传统观点认为, 套索RNA仅是pre-mRNA剪接过程的副产物, 可经由DBR1介导的去分支反应快速加工并降解。此外, 套索RNA特殊的分支结构使得早期研究难以通过常规逆转录技术实现完整序列的有效扩增。因此, 建立准确可靠、操作简便的套索来源环状RNA鉴定方法, 对深入解析其代谢规律及生物学功能具有重要意义。
鉴于线性RNA与套索类分支环状RNA的空间构象存在本质差异—套索RNA因在分支位点处存在包含2’-5’磷酸二酯键的分支结构而呈现环状形态, 因此在折叠与分子构型上与同等长度的线性RNA显著不同。这种结构特性使其在变性凝胶电泳或二维聚丙烯酰胺凝胶电泳中的迁移速率与线性RNA存在显著区别, 利用该特性可通过Northern blot等手段对其进行检测鉴定[3,50]。同时, 逆转录PCR(RT-PCR)也被广泛用于套索RNA的鉴定: 基于逆转录酶虽然效率低但也能勉强读取2’-5’磷酸二酯键的特性, 可在其环状区域设计一对背向引物, 进而通过反向PCR技术实现对套索RNA的特异性扩增与检测[51]。但这些传统方法只能实现少量位点的检测。
3.2 高通量测序方法基因组范围鉴定套索RNA
随着对套索RNA研究的深入, 亟待利用生物信息学手段在全基因组范围内鉴定各物种中的套索RNA。鉴于逆转录酶具有通过套索RNA的2’-5’磷酸二酯键的特性, 结合高通量测序与生物信息学分析已成为全基因组鉴定内含子套索RNA的核心手段。Taggart等[52]首先通过鉴定定位在全基因组内含子区域、反向排布且跨越分支位点的测序reads(intronic BSJ reads/lariat reads), 实现了对5′剪接位点(5′SS)与分支位点(BP)的精确界定, 为套索RNA的研究奠定了基础(图3A)。在实验层面, 可进一步利用3’-5’核酸外切酶RNase R处理总RNA。该酶能高效降解线性RNA(包括mRNA、rRNA等), 但无法降解含有2’-5’磷酸二酯键的闭合环状结构的套索RNA及环状RNA, 从而实现套索RNA与环状RNA的特异性富集[53]。因此,通过RNase R消化与rRNA去除等步骤富集套索来源环状RNA, 结合高通量测序可显著提升套索RNA鉴定的灵敏度与准确度[26,54-56]。
然而, 逆转录酶在分支位点分支处的通过能力较弱, 导致现有检测方法效率受限, 通常需借助其他策略克服该瓶颈。例如, 通过CIP和RppH去磷酸化酶及5’-3’核酸外切酶XRN-1消化清除线性RNA, 保留套索RNA; 再利用重组DBR1使其线性化后构建高通量测序文库, 即LIT-seq(lariat termini sequencing)与Branch-seq技术(图3B)[57-58]。这些方法能够捕获5′和3′端一一对应内含子5′SS和3′SS的测序reads,进而实现套索RNA的精确鉴定。此外, 共转录套索RNA测序(co-transcriptional lariat sequencing, CoLaseq)利用逆转录酶在套索RNA的2’-5’分支位点易发生终止的特性, 也可有效鉴定套索RNA的分支位点(图3B)[59]。
从高通量测序文库分析的角度来看, Taggart与Fairbrother[60]开发的ShapeShifter工具, 可基于内含子测序reads的覆盖形态鉴定并定量稳定存在的套索RNA(图3C)。针对多数公共RNA-seq数据未经过RNase R处理且易受内含子滞留干扰等问题, 亦可通过分支位点注释信息将内含子划分为环状区域(loop region, 5′SS-BP)与尾部区域(tail region, BP-3′SS); 对于缺乏分支位点注释的位点, 默认以3′剪接位点上游第26位核苷酸作为分支位点[26 44,61-62]。通过设定套索RNA环状区域/尾部区域(loop region/tail region)的测序reads比值≥2, 且通过内含子loop region计算得到的FPKM三次重复值均≥5的严格标准, 可筛选出稳定存在的套索RNA(图3D)。该双重判定策略显著提升了鉴定准确性,为解析套索RNA的代谢过程提供了可靠支撑[27,56]。
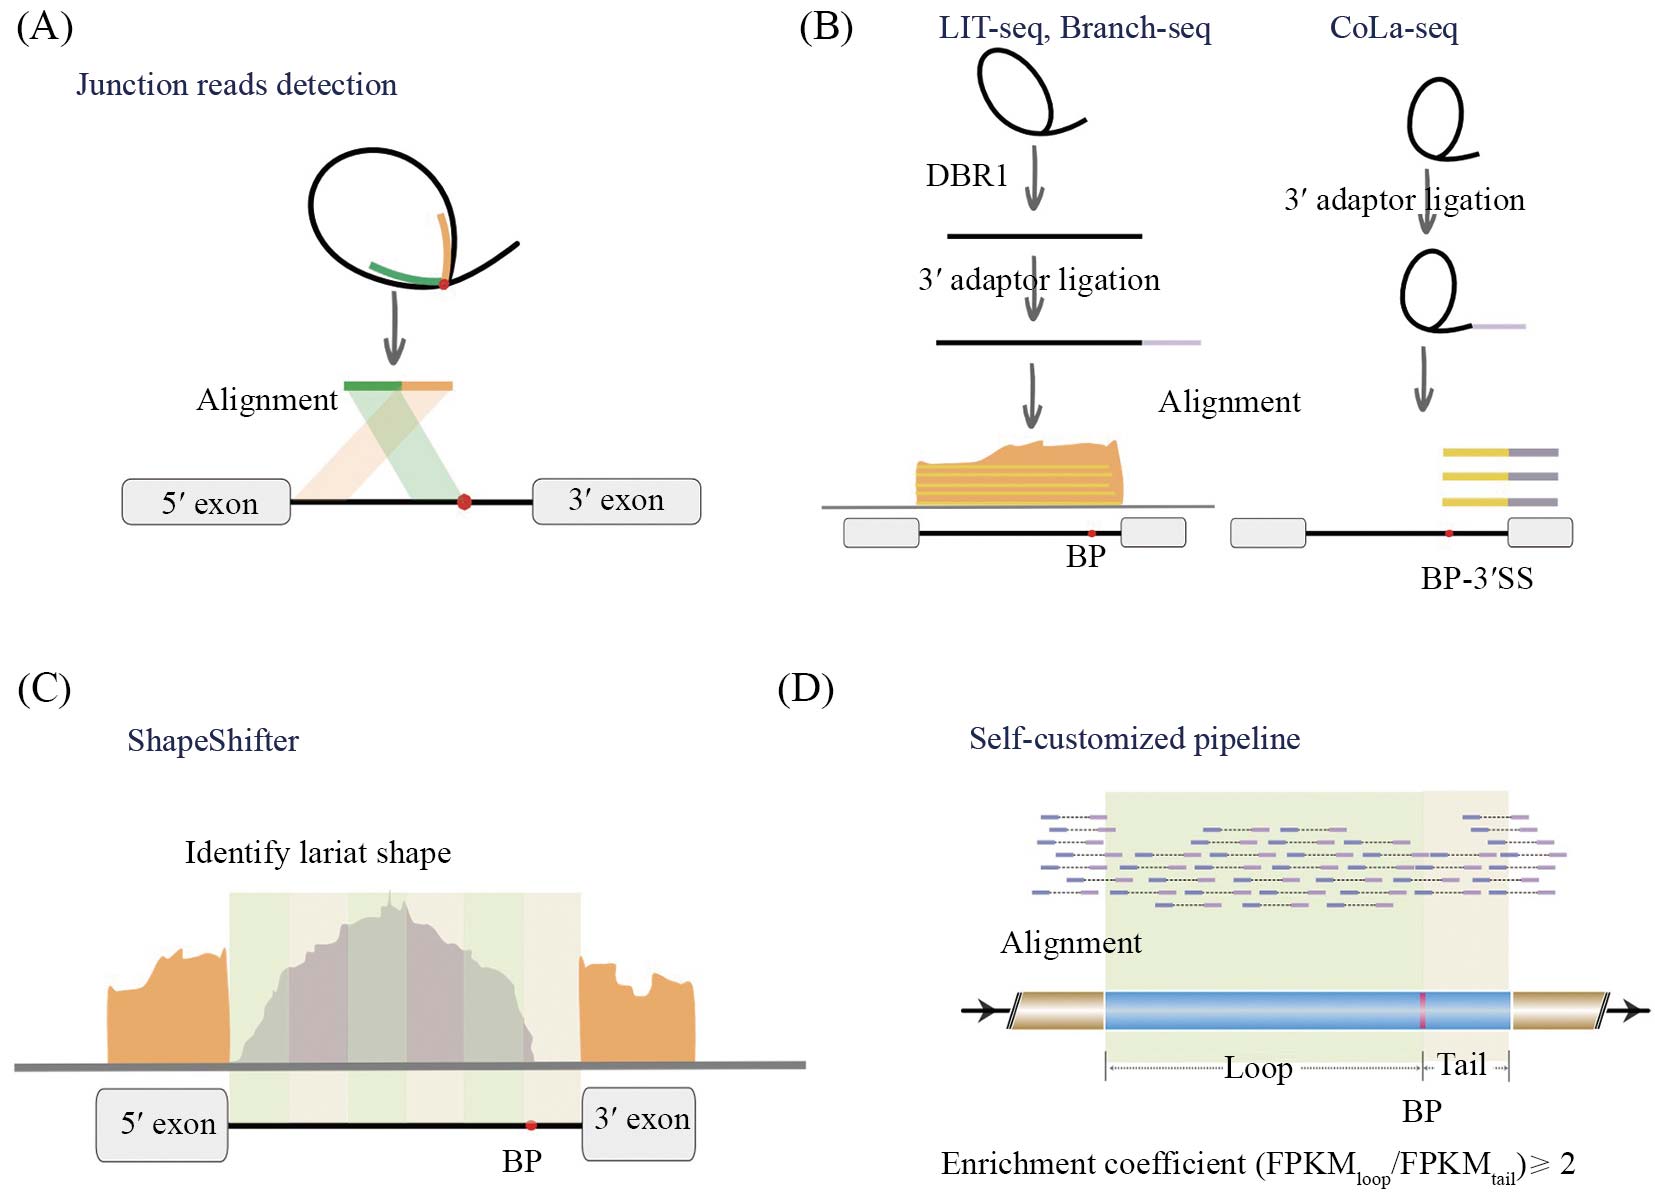
A: 跨分支位点reads检测法(junction reads detection), 利用逆转录酶读取跨分支位点的特异性连接序列(junction reads), 精准定位套索RNA的5′剪接位点(5′SS)与分支位点(BP)。B: 基于去分支或末端标记的测序技术(LIT-seq/Branch-seq), 利用重组DBR1将套索RNA线性化后建库, 或通过末端捕获技术直接测序获取BP至3′SS片段, 实现套索末端的高效鉴定。C: 基于测序覆盖度的形态分析法(ShapeShifter), 根据RNA-seq数据中内含子区域测序reads的覆盖形态特征, 对稳定积累的套索RNA进行鉴定与定量。D: 基于区域reads密度比值的筛选流程(self-customized pipeline),将内含子分为套索RNA环状区(loop region: 5′SS-BP)与套索RNA尾部区(tail region: BP-3′SS), 通过计算两区域的reads密度比值高效筛选稳定套索RNA。
A: junction reads detection, precise localization of the 5′SS (5′ splice site) and BP (branch point) of lariat RNAs using reverse transcriptase to read specific junction reads spanning the branchpoint. B: debranching- or terminal tagging-based sequencing (LIT-seq/Branch-seq), linearization of lariat RNAs using recombinant DBR1 prior to library construction, or direct sequencing of BP-to-3′SS fragments via terminal capture techniques to efficiently identify lariat termini. C: coverage profile-based shape analysis (ShapeShifter), identification and quantification of stably accumulated lariat RNAs based on the coverage profile and shape characteristics of intronic sequencing reads in RNA-seq data. D: region reads density ratio-based pipeline (self-customized pipeline), division of introns into loop region (5′SS-BP) and tail region (BP-3′SS) regions, followed by calculating the reads density ratio between the two regions to efficiently screen for stable lariat RNAs.
图3 套索RNA全基因组鉴定与检测的高通量测序策略(根据参考文献[26,52,57-60,62]改编)
Fig.3 High-throughput sequencing strategies for genome-wide identification and detection of lariat RNAs (adapted from references [26,52,57-60,62])
4 套索RNA的生物学功能和作用机制
随着高通量测序技术的迭代与生物信息学分析方法的完善, 跨物种研究不断证实部分套索RNA能够在体内特异且稳定地积累。这一发现打破了套索RNA仅为剪接副产物的传统认知, 极大推动了对其生物学功能的研究, 并为深入研究其生理调控机制奠定了重要基础[25-26,63-67]。
4.1 套索RNA作为底物加工成ncRNA
在正常生理状态下, 套索RNA被DBR1去分支线性化后, 会迅速被外切核酸酶降解。然而越来越多研究证实, DBR1介导的套索RNA去分支并非仅作为RNA降解清除的前提步骤, 更为多种内含子来源ncRNA的生物生成提供了底物, 极大拓展了套索RNA代谢调控的生物学功能(图4A)。对于携带box C/D或box H/ACA保守基序的内含子, 经DBR1去分支后的线性内含子RNA, 可通过结合核仁小分子核糖核蛋白复合物(small nucleolar ribonucleoprotein, snoRNP)抵御外切酶降解, 进而加工为成熟的核仁小分子RNA(small nucleolar RNA, snoRNA), 虽然植物中snoRNA的生物生成有其他途径, 但DBR1介导的去分支步骤是真核生物内含子来源snoRNA的主要生成途径[68-69]。此外, 内含子套索RNA也是真核生物miRNA(microRNA)生物生成通路的重要组成部分, 其加工主要包括两大核心途径: 在经典途径中, 含颈环结构的初级miRNA(pri-miRNA)的套索RNA经DBR1去分支后释放前体, 随后进入动植物各自的经典miRNA加工通路完成成熟[70-72]; 而在非经典mirtron miRNA通路中, 加工过程完全依赖套索RNA的去分支, 线性化的内含子序列可直接折叠形成含颈环结构的前体miRNA(pre-miRNA), 从而绕过Drosha的切割步骤。该通路在真核生物中具有进化保守性[73-74]; 然而mirtron miRNA在植物中所占比例非常低, 且被证明有功能的几乎很少[74]。此外, 在酵母新型隐球菌中还发现, 滞留在剪接体上的剪接中间体套索RNA经DBR1线性化后, 可被诱导加工生成siRNA(small interfering RNA)[75]。
最近一项植物中关于套索RNA的研究表明,当DBR1功能受损或植物遭受病原体感染等应激刺激时, 未能被及时清除的套索RNA会异常积累, 并被RNA干扰(RNAi)途径劫持转化为套索RNA来源的小干扰RNA(lariat-derived small interfering RNA, lasiRNA)。在这一过程中, 单链套索RNA首先被植物内源的RNA依赖性RNA聚合酶(RNA-dependent RNA polymerase, RDR)识别并作为模板转录合成双链RNA(double-strand RNA, dsRNA)。随后, 生成的dsRNA被DCL(dicer-like)蛋白家族切割: 在正常或DBR1缺陷状态下, 主要由DCL4优先切割产生21 nt的lasiRNA; 而在DCL4受抑制或特定病原体(如TuMV病毒)入侵时, 套索RNA则会被DCL2切割为22 nt的lasiRNA。这些生成的lasiRNA能够跨靶向同源mRNA的外显子区域。尤其是22 nt lasiRNA, 它具备诱导产生次级小RNA(secondary siRNA)的能力, 进而引发广泛的外显子来源的siRNA爆发。这些次级siRNA一方面通过抑制翻译(如靶向NIA1/2等发育关键基因)导致植物生长发育停滞, 另一方面会在病毒细菌感染时过度沉默免疫基因(如PR5、WRKY53), 最终破坏植物的抗病防御反应[76]。
4.2 套索RNA顺式调控基因表达
已有研究表明, 套索RNA可顺式调控基因的转录表达。多项研究证实, 从高等植物到人类细胞系,套索RNA的全基因组表达水平与其宿主基因表达量呈显著正相关, 这进一步提示该类分子对其宿主基因具有普遍且重要的调控潜力, 也为深入挖掘套索RNA的生物学功能指明了方向(图4B)[26,63-64]。
现有研究已逐步阐明套索RNA调控宿主基因转录的具体分子机制。其中, 最具代表性的是人类细胞中丰度较高的套索来源环状RNA—ci-ankrd52,该RNA主要富集于自身转录位点, 能与RNA聚合酶II(RNA polymerase II, Pol II)转录延伸复合物直接相互作用, 正向调控Pol II的转录延伸活性; 敲降ci-ankrd52可显著下调母本基因ankrd52的mRNA水平, 证实了套索RNA顺式转录激活的功能[64]。此外, 果蝇中鉴定的经典功能型套索来源环状RNA—sisR-4,由dpn(deadpan)基因座第二个内含子剪接后逃逸去分支产生, 可通过母源卵母细胞传递, 并在胚胎早期发育阶段正向调控dpn基因的转录[77]。而在植物中, 高温响应通路中套索RNA可发挥转录水平正向调控作用, 有研究报道热胁迫诱导SIC蛋白相分离,促使DBR1进入应激颗粒, 从而抑制套索RNA降解;源自HSP70-4、HSP90-1内含子的套索RNA大量累积, 在细胞核内促进母本基因的转录, 从而上调热激蛋白表达, 正向维持植物耐热性, 这一结果为套索RNA参与植物逆境响应提供了证据。这也表明此类调控机制在真核生物中具有一定的进化保守性。
4.3 套索RNA调控pre-mRNA剪接
Pre-mRNA剪接过程中剪接体的循环再利用,是真核生物基因表达调控的核心环节。套索RNA被剪接体释放并去分支线性化降解, 这是剪接体完成催化后顺利解离并进入下一轮循环的关键前提。DBR1作为真核生物中唯一能特异性水解套索RNA的2’-5’磷酸二酯键的去分支酶, 其功能完整性不仅直接决定细胞内套索RNA水平, 更全面调控剪接体循环效率与pre-mRNA剪接保真性(图4C)。在正常生理状态下, 剪接产生的套索RNA会被DBR1快速去分支线性化, 随后被核酸外切酶降解; 而DBR1功能受损会导致细胞内套索RNA在全基因组范围内显著积累, 进而直接干扰剪接体的正常循环[78]。在裂殖酵母中, 敲除DBR1会引发细胞内套索RNA大量累积, 同时导致全基因组premRNA剪接效率较野生型显著下降[62]; 在人类细胞系中, 敲低DBR1同样会导致全基因组套索RNA水平上调, 并引发外显子跳跃可变剪接事件广泛增加, 该分子表型是由套索RNA累积所致的剪接体循环缺陷导致[16]。
真核生物中剪接与转录固有的共转录偶联特性, 会显著放大由DBR1缺陷及套索RNA累积引发的剪接异常效应。DBR1功能缺失使得剪接体从累积的套索RNA上释放显著延迟, 拉长了内含子切除与外显子定义之间的窗口期, 这为套索RNA异常累积导致可变剪接紊乱提供了核心分子机制。该机制在真核生物中具有高度进化保守性: 模式植物拟南芥dbr1弱突变体中同样存在全基因组套索RNA显著累积并伴随可变剪接紊乱的表型[25-26], 这为植物中套索RNA代谢与pre-mRNA剪接调控的关联研究提供了重要遗传模型。
4.4 套索RNA作为分子海绵或分子支架的生物学功能
近年来的研究表明, 体内稳定的套索RNA可通过分子海绵、分子支架等多种机制广泛参与真核生物的转录后调控(图4D)。一方面, 含有miRNA结合位点的套索RNA可通过竞争性内源RNA(competing endogenous RNA, ceRNA)机制发挥分子海绵效应, 竞争性结合miRNA以阻断其对靶mRNA的降解, 从而维持靶基因的表达稳态[27,64]。另一方面, 套索RNA还可作为诱饵吸附细胞内RBP, 调控靶蛋白的亚细胞定位、病理聚集与生物学功能。这一机制在多种生理与病理模型中得到了深入验证: 在肌萎缩侧索硬化(amyotrophic lateral sclerosis, ALS)模型中, DBR1缺陷导致的套索RNA积累可通过直接结合致病蛋白TDP-43阻断其病理聚化, 进而显著降低其神经毒性[79]; 而在单纯疱疹病毒(herpes simplex virus, HSV)感染体系中, 病毒编码的潜伏期相关转录本(latency-associated transcript,LAT)作为稳定套索RNA, 可通过直接结合核糖体60S大亚基影响核糖体组装, 实现对宿主与病毒基因翻译效率的全局调控[80]。此外, 部分高表达套索RNA凭其独特的环状拓扑结构及抗核酸外切酶的稳定性, 可充当大分子复合物组装的分子支架。
在模式植物拟南芥中的研究进一步拓宽了套索RNA的分子海绵机制, 在对miRNA生物生成调控因子进行正向遗传筛选鉴定了dbr1-2弱突变体, 该突变体在全基因组套索RNA大量积累的同时伴随miRNA水平的全局性下调; 机制研究表明, 积累的套索RNA可作为miRNA加工复合物的分子海绵, 阻碍其对pre-miRNA的切割加工, 从而影响miRNA的生物生成。这一发现不仅揭示了套索RNA调控植物小RNA通路的新机制, 也明确了DBR1介导的去分支降解是维护植物miRNA生物生成稳态的核心保障[25]。
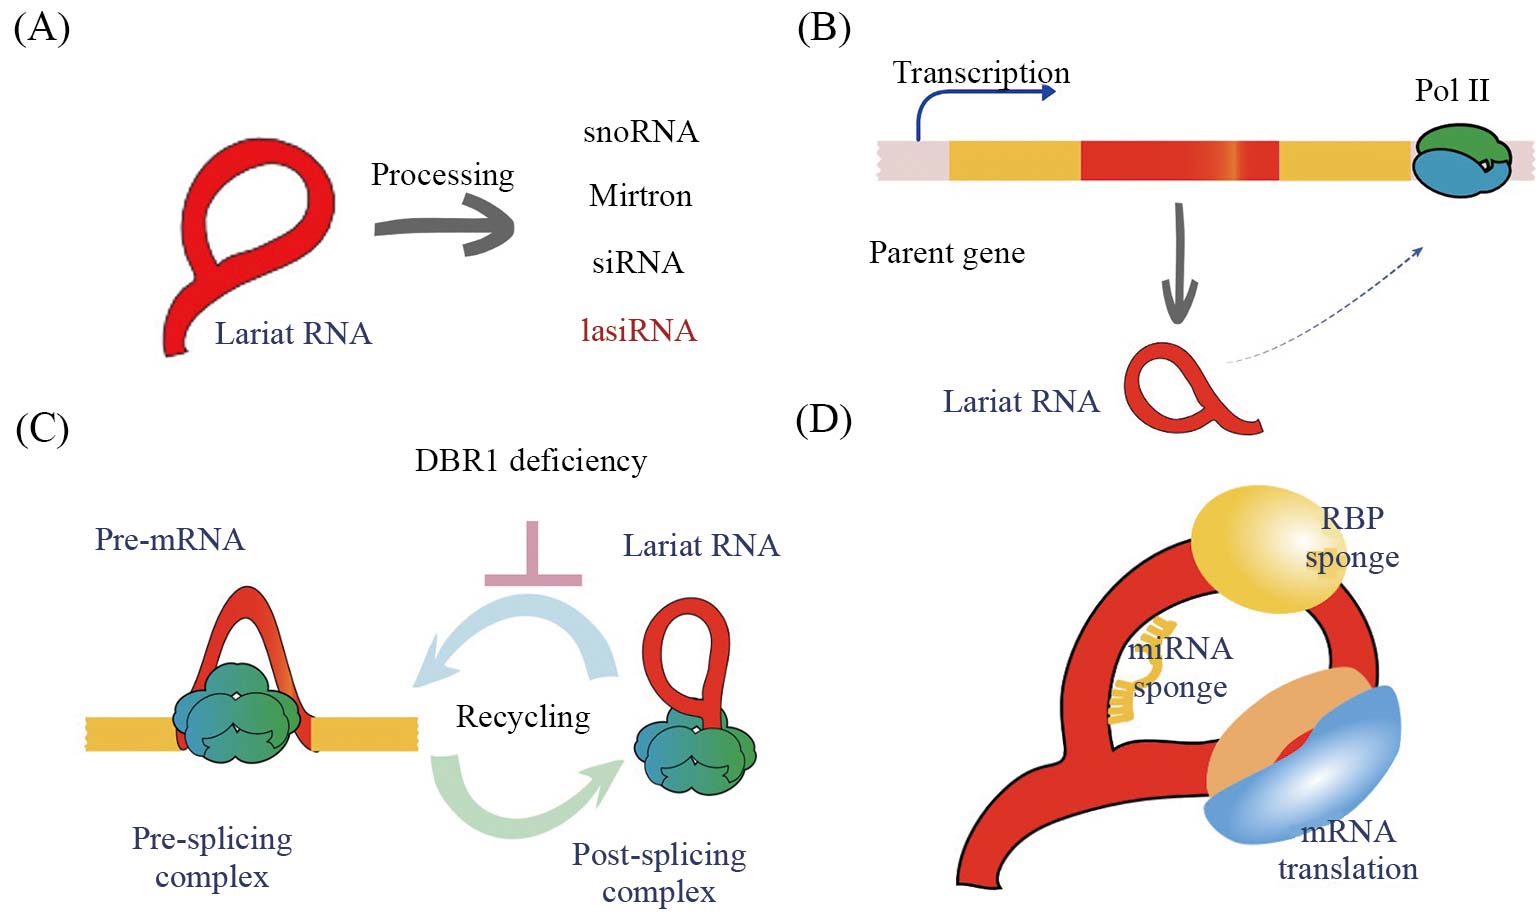
A: 作为非编码RNA前体, 套索RNA可进一步加工生成小核仁RNA(snoRNA)、mirtron、siRNA以及套索衍生siRNA(lasiRNA)等多种非编码RNA。B: 顺式调控亲本基因转录, 剪接产生的套索RNA可反馈调控RNA聚合酶II(Pol II)的活性, 进而顺式调控其亲本基因(parent gene)的转录过程。C: 维护剪接体复合物循环, DBR1缺陷会抑制套索RNA的去分支与降解, 导致后剪接体复合物(post-splicing complex)无法正常解聚释放,从而阻碍剪接体组分向前剪接体复合物(pre-splicing complex)的回收循环。D: 充当“分子海绵”及调控翻译, 套索RNA可作为miRNA海绵(miRNA sponge)或RNA结合蛋白海绵(RBP sponge)吸附相关分子, 同时还能通过直接结合翻译复合体或核糖体组分调控mRNA的翻译效率。
A: serving as precursors for non-coding RNAs, lariat RNAs can be further processed into various non-coding RNAs, including snoRNA, mirtron, siRNA, and lasiRNA (lariat-derived small interfering RNA). B: cis-regulating parent gene transcription, spliced lariat RNAs can feedback-regulate the activity of RNA Pol II (polymerase II), thereby cis-regulating the transcription of their parent genes. C: maintaining spliceosome assembly and recycling, DBR1 deficiency blocks the debranching and degradation of lariat RNAs, preventing the disassembly of the post-splicing complex and impeding the recycling of spliceosomal components into pre-splicing complexes. D: acting as molecular sponges and regulating translation, lariat RNAs function as miRNA sponges or RBP (RNA-binding protein) sponges to sequester target molecules, and can also regulate mRNA translation efficiency by interacting with translational machinery or ribosomal components.
图4 套索RNA的生物学功能与作用机制(根据参考文献[5]改编)
Fig.4 Biological functions and regulatory mechanisms of lariat RNAs (adapted from reference [5])
5 总结与讨论
5.1 DBR1介导套索RNA降解的未解机制
在真核生物中, RNA转录、剪接与代谢过程由众多因子共同参与、协同介导完成。然而作为RNA质量监控的关键步骤, 套索RNA的去分支却几乎完全依赖于DBR1。与调控其他RNA加工过程的多组分复合物相比, DBR1展示出极高的高效性与自主性, 该特性引出了关于套索RNA代谢生物学机制的核心科学问题。
首先, DBR1的生化特异性反映出特殊的底物识别策略。与传统依赖专一性RNA结合域(RNA binding domain, RBD)或辅助因子的RNA加工酶不同, DBR1似乎通过直接识别并结合分支RNA结构,这使得DBR1去分支活性在细胞内的时空间调控机制仍不清楚。
其次, 虽然传统观点认为DBR1介导的套索RNA去分支反应发生于细胞核内, 但越来越多的证据表明, 在正常生理状态下, DBR1与套索RNA均可定位至细胞质。这种双重定位不仅提示了其潜在的非经典功能, 也引发了关于套索RNA核质运输调控机制的思考。解答这些问题有赖于在活细胞水平对去支活性进行空间定位及对套索RNA的动态追踪。
此外, DBR1活性可能受到翻译后修饰或亚细胞区域化的精密调控, 从而根据细胞生理需求动态改变套索RNA的周转速率。例如, 病毒感染或氧化应激等环境刺激可能短暂抑制DBR1活性, 引发套索RNA的应激性积累; 而在发育阶段转换过程中, 细胞则可能需要提升DBR1活性以加速核苷酸的回收利用。在进化选择压力下, DBR1避免了代谢通路的冗余, 演变为一种多功能的“分子把关者”(molecular gatekeeper), 将其催化活性与细胞稳态维持及非经典RNA功能紧密偶联。
5.2 套索RNA鉴定与合成的技术进展与挑战
随着高通量测序技术与套索检测算法的深度融合, 真核生物套索RNA图谱得到了极大丰富, 但在检测灵敏度与特异性上仍存在明显瓶颈。目前, 精准鉴定全长套索RNA的主要障碍在于逆转录酶难以高效跨越分支点处的2’-5’磷酸二酯键。因此, 开发能够高效跨越套索RNA分支位点的工程化逆转录酶变体, 将为套索RNA的高精度定量与结构注释带来突破。
此外深入探究套索RNA的生物学功能必须依赖能够忠实还原真实2’-5’磷酸二酯键的体外合成方法。利用哺乳动物核提取物进行体外剪接或直接化学合成分支寡核苷酸等传统手段, 在产率和序列灵活性上均受到严重限制。近年来, 基于古菌II型内含子核酶(group II intron ribozymes)介导的合成技术为解决这一难题提供了新思路[81-82]。该自剪接策略克服了传统方法的低效缺陷, 实现了特定序列全长套索RNA的高产率、规模化制备。
5.3 套索RNA的新兴功能与调控谜题
细胞内未被降解(或稳定存在)的套索RNA, 其生物学功能全景仍有待深入探索。作为一类特殊的环状RNA结构, 高丰度的套索RNA可作为核酸结构支架组装RNP复合物, 或作为“分子海绵”竞争性吸附RNA结合蛋白, 进而参与转录后的调控。
套索RNA在不同组织和细胞类型中的特异性积累, 进一步暗示了其依赖于生理环境的功能多样性。同时弄清楚套索RNA生物合成的动力学调控—尤其是DBR1介导的去分支与核输出过程的竞争关系—是解答套索RNA结构拓扑性与功能之间因果联系的关键。基于此, 我们提出了“动力学竞争模型”(kinetic competition model)假设: 若去支反应发生延迟(如DBR1活性下调或发生空间隔离), 结构完整的套索RNA将被优先输出至细胞质, 其独特的环状拓扑结构使其能够在胞质中发挥新的功能(如充当胞质蛋白或miRNA的支架或海绵); 反之, 若核内去分支高效发生, 则套索RNA将被快速降解。套索RNA结构在真核生物中的高度保守性, 表明其经历了多功能化的进化优化。近年来, 套索RNA动态平衡的失调已被证实与神经退行性疾病及病毒致病机制密切相关, 这使其具备成为新型临床治疗靶点的潜质。深入阐明套索RNA稳态与RNA质量控制通路之间的相互作用, 将增加科学界对发育与疾病发生过程中基因表达可塑性认识的一个新的角度。
参考文献 (References)
[1] Chow L T, Gelinas R E, Broker T R, et al. An amazing sequence arrangement at the 5′ ends of adenovirus 2 messenger RNA [J]. Cell, 1977, 12(1): 1-8.
[2] Berget S M, Moore C, Sharp P A. Spliced segments at the 5’terminus of adenovirus 2 late mRNA [J]. Proceedings of the National Academy of Sciences of the United States of America, 1977, 74(8): 3171-3175.
[3] Ruskin B, Krainer A R, Maniatis T, et al. Excision of an intact intron as a novel lariat structure during pre-mRNA splicing in vitro [J]. Cell, 1984, 38(1): 317-331.
[4] Chapman K B, Boeke J D. Isolation and characterization of the gene encoding yeast debranching enzyme [J]. Cell, 1991, 65(3): 483-492.
[5] Tang Q, Liao D, Zheng B L. DBR1 orchestrates the fate of lariat RNA: debranching-dependent turnover and function [J]. Nucleic Acids Research, 2025, 53(13): gkaf639.
[6] Lee Y, Rio D C. Mechanisms and regulation of alternative premRNA splicing [J]. Annual Review of Biochemistry, 2015, 84: 291-323.
[7] Saldanha R, Mohr G, Belfort M, et al. Group I and group II introns [J]. The FASEB Journal, 1993, 7(1): 15-24.
[8] Zimmerly S, Semper C. Evolution of group II introns [J]. Mobile DNA, 2015, 6(1): 7.
[9] Wahl M C, Will C L, Lührmann R. The spliceosome: design principles of a dynamic RNP machine [J]. Cell, 2009, 136(4): 701-718.
[10] Shi Y G. Mechanistic insights into precursor messenger RNA splicing by the spliceosome [J]. Nature Reviews Molecular Cell Biology, 2017, 18(11): 655-670.
[11] Ye Y, de Leon J, Yokoyama N, et al. DBR1 siRNA inhibition of HIV-1 replication [J]. Retrovirology, 2005, 2(1): 63.
[12] Galvis A E, Fisher H E, Nitta T, et al. Impairment of HIV-1 cDNA synthesis by DBR1 knockdown [J]. Journal of Virology, 2014, 88(12): 7054-7069.
[13] Nam K, Lee G, Trambley J, et al. Severe growth defect in a Schizosaccharomyces pombe mutant defective in intron lariat degradation [J]. Molecular and Cellular Biology, 1997, 17(2): 809-818.
[14] Wang H, Hill K, Perry S E. An Arabidopsis RNA lariat debranching enzyme is essential for embryogenesis [J]. The Journal of Biological Chemistry, 2004, 279(2): 1468-1473.
[15] Cheng J P, Zhang Y, Li Z W, et al. A lariat-derived circular RNA is required for plant development in Arabidopsis [J]. Science China Life Sciences, 2018, 61(2): 204-213.
[16] Buerer L, Clark N E, Welch A, et al. The debranching enzyme Dbr1 regulates lariat turnover and intron splicing [J]. Nature Communications, 2024, 15(1): 4617.
[17] Zhang S Y, Clark N E, Freije C A, et al. Inborn errors of RNA lariat metabolism in humans with brainstem viral infection [J]. Cell, 2018, 172(5): 952-965.
[18] Shamseldin H E, Sadagopan M, Martini J, et al. A founder DBR1 variant causes a lethal form of congenital ichthyosis [J]. Human Genetics, 2023, 142(10): 1491-1498.
[19] Kim J W, Kim H C, Kim G M, et al. Human RNA lariat debranching enzyme cDNA complements the phenotypes of Saccharomyces cerevisiae dbr1 and Schizosaccharomyces pombe dbr1 mutants [J]. Nucleic Acids Research, 2000, 28(18): 3666-3673.
[20] Kim H C, Kim G M, Yang J M, et al. Cloning, expression, and complementation test of the RNA lariat debranching enzyme cDNA from mouse [J]. Molecules and Cells, 2001, 11(2): 198-203.
[21] Clark N E, Katolik A, Taggart A J, et al. Metal content and kinetic properties of yeast RNA lariat debranching enzyme Dbr1 [J]. RNA, 2022, 28(7): 927-936.
[22] Katolik A, Clark N E, Tago N, et al. Fluorescent branched RNAs for high-throughput analysis of Dbr1 enzyme kinetics and inhibition [J]. ACS Chemical Biology, 2017, 12(3): 622-627.
[23] Clark N E, Katolik A, Roberts K M, et al. Metal dependence and branched RNA cocrystal structures of the RNA lariat debranching enzyme Dbr1 [J]. Proceedings of the National Academy of Sciences of the United States of America, 2016, 113(51): 14727-14732.
[24] Montemayor E J, Katolik A, Clark N E, et al. Structural basis of lariat RNA recognition by the intron debranching enzyme Dbr1 [J]. Nucleic Acids Research, 2014, 42(16): 10845-10855.
[25] Li Z W, Wang S P, Cheng J P, et al. Intron lariat RNA inhibits microRNA biogenesis by sequestering the dicing complex in Arabidopsis [J]. PLoS Genetics, 2016, 12(11): e1006422.
[26] Zhang X T, Zhang Y, Wang T Y, et al. A comprehensive map of intron branchpoints and lariat RNAs in plants [J]. The Plant Cell, 2019, 31(5): 956-973.
[27] Zhang Y, Zhang X T, Tang Q, et al. A repertoire of intronic lariat RNAs reveals tissue-specific regulation and target mimicry potential in plants [J]. Science China Life Sciences, 2024, 67(6): 1280-1291.
[28] Nam K, Hudson R, Chapman K B, et al. Yeast lariat debranching enzyme. Substrate and sequence specificity [J]. The Journal of Biological Chemistry, 1994, 269(32): 20613-20621.
[29] Kataoka N, Dobashi I, Hagiwara M, et al. HDbr1 is a nucleocytoplasmic shuttling protein with a protein phosphatase-like motif essential for debranching activity [J]. Scientific Reports, 2013, 3: 1090.
[30] Choi Y, Lee H H, Park J, et al. Intron turnover is essential to the development and pathogenicity of the plant pathogenic fungus Fusarium graminearum [J]. Communications Biology, 2022,
5(1): 1129.
[31] Valdés J, Ortuño-Pineda C, Saucedo-Cárdenas O, et al. Unexplored molecular features of the Entamoeba histolytica RNA lariat debranching enzyme Dbr1 expression profile [J]. Frontiers in Cellular and Infection Microbiology, 2018, 8: 228.
[32] Khalid M F, Damha M J, Shuman S, et al. Structure-function analysis of yeast RNA debranching enzyme (Dbr1), a manganese-dependent phosphodiesterase [J]. Nucleic Acids Research, 2005, 33(19): 6349-6360.
[33] Matange N, Podobnik M, Visweswariah S S. Metallophosphoesterases: structural fidelity with functional promiscuity [J]. The Biochemical Journal, 2015, 467(2): 201-216.
[34] Schwer B, Khalid F, Shuman S. Mechanistic insights into the manganese-dependent phosphodiesterase activity of yeast Dbr1 with bis-p-nitrophenylphosphate and branched RNA substrates [J]. RNA, 2016, 22(12): 1819-1827.
[35] Ransey E, Paredes E, Dey S K, et al. Crystal structure of the Entamoeba histolytica RNA lariat debranching enzyme EhDbr1 reveals a catalytic Zn2+/Mn2+ heterobinucleation [J]. FEBS Letters, 2017, 591(13): 2003-2010.
[36] Clark N E, Katolik A, Gallant P, et al. Activation of human RNA lariat debranching enzyme Dbr1 by binding protein TTDN1 occurs though an intrinsically disordered C-terminal domain [J]. The Journal of Biological Chemistry, 2023, 299(9): 105100.
[37] Schwer B, Gross C H. Prp22, a DExH-box RNA helicase, plays two distinct roles in yeast pre-mRNA splicing [J]. The EMBO Journal, 1998, 17(7): 2086-2094.
[38] Martin A, Schneider S, Schwer B. Prp43 is an essential RNA dependent ATPase required for release of lariat-intron from the spliceosome [J]. The Journal of Biological Chemistry, 2002, 277(20): 17743-17750.
[39] Tanaka N, Aronova A, Schwer B. Ntr1 activates the Prp43 helicase to trigger release of lariat-intron from the spliceosome [J]. Genes & Development, 2007, 21(18): 2312-2325.
[40] Toroney R, Nielsen K H, Staley J P. Termination of pre-mRNA splicing requires that the ATPase and RNA unwindase Prp43p acts on the catalytic snRNA U6 [J]. Genes & Development, 2019, 33(21/22): 1555-1574.
[41] Bohnsack K E, Kanwal N, Bohnsack M T. Prp43/DHX15 exemplify RNA helicase multifunctionality in the gene expression network [J]. Nucleic Acids Research, 2022, 50(16): 9012-9022.
[42] Enders M, Ficner R, Adio S. Conformational dynamics of the RNA binding channel regulates loading and translocation of the DEAH-box helicase Prp43 [J]. Nucleic Acids Research, 2023, 51(12): 6430-6442.
[43] Tsai R T, Fu R H, Yeh F L, et al. Spliceosome disassembly catalyzed by Prp43 and its associated components Ntr1 and Ntr2 [J]. Genes & Development, 2005, 19(24): 2991-3003.
[44] Masaki S, Yoshimoto R, Kaida D, et al. Identification of the specific interactors of the human lariat RNA debranching enzyme 1 protein [J]. International Journal of Molecular Sciences, 2015, 16(2): 3705-3721.
[45] Garrey S M, Katolik A, Prekeris M, et al. A homolog of lariatdebranching enzyme modulates turnover of branched RNA [J]. RNA, 2014, 20(8): 1337-1348.
[46] Wu C Y, Wang X S, Li Y, et al. Sequestration of DBR1 to stress granules promotes lariat intronic RNAs accumulation for heatstress tolerance [J]. Nature Communications, 2024, 15(1): 7696.
[47] Theil A F, Pines A, Kalayci T, et al. Trichothiodystrophy-associated MPLKIP maintains DBR1 levels for proper lariat debranching and ectodermal differentiation [J]. EMBO Molecular Medicine, 2023, 15(11): e17973.
[48] Townley B A, Buerer L, Tsao N, et al. A functional link between lariat debranching enzyme and the intron-binding complex is defective
in non-photosensitive trichothiodystrophy [J]. Molecular Cell, 2023, 83(13): 2258-2275.
[49] Ge H R, Tang Q, Wu J J, et al. Debranching enzyme DBR1-mediated lariat RNA turnover requires ALBA proteins in Arabidopsis [J]. Molecular Cell, 2025, 85(22): 4183-4197.
[50] Murray H L, Mikheeva S, Coljee V W, et al. Excision of group II introns as circles [J]. Molecular Cell, 2001, 8(1): 201-211.
[51] Lorsch J R, Bartel D P, Szostak J W. Reverse transcriptase reads through a 2’-5’ linkage and a 2’-thiophosphate in a template [J].
Nucleic Acids Research, 1995, 23(15): 2811-2814.
[52] Taggart A J, Desimone A M, Shih J S, et al. Large-scale mapping of branchpoints in human pre-mRNA transcripts in vivo [J]. Nature
Structural & Molecular Biology, 2012, 19(7): 719-721.
[53] Vincent H A, Deutscher M P. Substrate recognition and catalysis by the exoribonuclease RNase R [J]. The Journal of Biological
Chemistry, 2006, 281(40): 29769-29775.
[54] Panda A C, De S, Grammatikakis I, et al. High-purity circular RNA isolation method (RPAD) reveals vast collection of intronic circRNAs [J]. Nucleic Acids Research, 2017, 45(12): e116.
[55] Xiao M S, Wilusz J E. An improved method for circular RNA purification using RNase R that efficiently removes linear RNAs containing G-quadruplexes or structured 3’ ends [J]. Nucleic Acids Research, 2019, 47(16): 8755-8769.
[56] Wang T Y, Zhang X T, Zheng B L. Identification of intronic lariat-derived circular RNAs in Arabidopsis by RNA deep sequencing [J]. Plant Circular RNAs: Methods and Protocols, 2021, 2362: 93-100.
[57] Qin D M, Huang L, Wlodaver A, et al. Sequencing of lariat termini in S. cerevisiae reveals 5’ splice sites, branch points, and novel splicing events [J]. RNA, 2016, 22(2): 237-253.
[58] Gould G M, Paggi J M, Guo Y, et al. Identification of new branch points and unconventional introns in Saccharomyces cerevisiae [J]. RNA, 2016, 22(10): 1522-1534.
[59] Zeng Y, Fair B J, Zeng H L, et al. Profiling lariat intermediates reveals genetic determinants of early and late co-transcriptional splicing [J]. Molecular Cell, 2022, 82(24): 4681-4699.
[60] Taggart A J, Fairbrother W G. ShapeShifter: a novel approach for identifying and quantifying stable lariat intronic species in RNAseq data [J]. Quantitative Biology, 2018, 6: 267-274.
[61] Taggart A J, Lin C L, Shrestha B, et al. Large-scale analysis of branchpoint usage across species and cell lines [J]. Genome Research, 2017, 27(4): 639-649.
[62] Bitton D A, Rallis C, Jeffares D C, et al. LaSSO, a strategy for genome-wide mapping of intronic lariats and branch points using RNA-seq [J]. Genome Research, 2014, 24(7): 1169-1179.
[63] Zhang Y, Zhang X T, Tang Q, et al. A repertoire of lariat intronic RNAs reveals tissue-specific regulation and target mimicry potential in plants [J]. Science China Life Sciences, 2024, 67: 1280-1291.
[64] Zhang Y, Zhang X O, Chen T, et al. Circular intronic long noncoding RNAs [J]. Molecular Cell, 2013, 51(6): 792-806.
[65] Talhouarne G J, Gall J G. Lariat intronic RNAs in the cytoplasm of Xenopus tropicalis oocytes [J]. RNA, 2014, 20(9): 1476-1487.
[66] Talhouarne G J, Gall J G. Lariat intronic RNAs in the cytoplasm of vertebrate cells [J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(34): 7970-7977.
[67] Gardner E J, Nizami Z F, Talbot C C Jr, et al. Stable intronic sequence RNA (sisRNA), a new class of noncoding RNA from the oocyte nucleus of Xenopus tropicalis [J]. Genes & Development, 2012, 26(22): 2550-2559.
[68] Ooi S L, Samarsky D A, Fournier M J, et al. Intronic snoRNA biosynthesis in saccharomyces cerevisiae depends on the lariatdebranching
enzyme: intron length effects and activity of a precursor snoRNA [J]. RNA, 1998, 4(9): 1096-1110.
[69] Fragapane P, Prislei S, Michienzi A, et al. A novel small nucleolar RNA (U16) is encoded inside a ribosomal protein intron and originates by processing of the pre-mRNA [J]. The EMBO Journal, 1993, 12(7): 2921-2928.
[70] Baskerville S, Bartel D P. Microarray profiling of microRNAs reveals frequent coexpression with neighboring miRNAs and host genes [J]. RNA, 2005, 11(3): 241-247.
[71] Rodriguez A, Griffiths-Jones S, Ashurst J L, et al. Identification of mammalian microRNA host genes and transcription units [J]. Genome Research, 2004, 14(10a): 1902-1910.
[72] Ruby J G, Jan C H, Bartel D P. Intronic microRNA precursors that bypass Drosha processing [J]. Nature, 2007, 448(7149): 83-86.
[73] Okamura K, Hagen J W, Duan H, et al. The mirtron pathway generates microRNA-class regulatory RNAs in Drosophila [J]. Cell, 2007, 130(1): 89-100.
[74] Meng Y J, Shao C G. Large-scale identification of mirtrons in Arabidopsis and rice [J]. PLoS One, 2012, 7(2): e31163.
[75] Dumesic P A, Natarajan P, Chen C B, et al. Stalled spliceosomes are a signal for RNAi-mediated genome defense [J]. Cell, 2013, 152(5): 957-968.
[76] Tang Q, Ding C X, Zhang X T, et al. Lariat RNA debranching prevents harmful siRNA burst in plants [J]. Science, 2026, 392(6805): 1401-1407.
[77] Tay M L, Pek J W. Maternally inherited stable intronic sequence RNA triggers a self-reinforcing feedback loop during development [J]. Current Biology, 2017, 27(7): 1062-1067.
[78] Han B, Park H K, Ching T, et al. Human DBR1 modulates the recycling of snRNPs to affect alternative RNA splicing and contributes to the suppression of cancer development [J]. Oncogene, 2017, 36(38): 5382-5391.
[79] Armakola M, Higgins M J, Figley M D, et al. Inhibition of RNA lariat debranching enzyme suppresses TDP-43 toxicity in ALS disease models [J]. Nature Genetics, 2012, 44(12): 1302-1309.
[80] Inman M, Perng G C, Henderson G, et al. Region of herpes simplex virus type 1 latency-associated transcript sufficient for wildtype spontaneous reactivation promotes cell survival in tissue culture [J]. Journal of Virology, 2001, 75(8): 3636-3646.
[81] Wang L, Xie J H, Zhang C, et al. Structural basis of circularly permuted group II intron self-splicing [J]. Nature Structural & Molecular Biology, 2025, 32(6): 1091-1100.
[82] Ling X B, Yao Y Q, Ma J B. Structures of a natural circularly permuted group II intron reveal mechanisms of branching and backsplicing [J]. Nature Structural & Molecular Biology, 2025, 32(6): 1101-1110.

 中文版
 英文版